miércoles, 1 de abril de 2015

biología - biología sistemática


los virus : Papillomaviridae es una familia de virus que infectan a un amplio rango de huéspedes, desde aves a manatíes.1 2 3 Además, se conocen más de 100 diferentes tipos de papilomavirus humanos (HPV). Tienen un genoma ADN bicatenario y por lo tanto pertenecen al Grupo I de la Clasificación de Baltimore. Su estructura se caracteriza por no presentar envoltura, la cápside es de simetría icosaédrica y mide unos 60 nm de diámetro.- ...........................................:http://es.wikipedia.org/w/index.php?title=Especial:Libro&bookcmd=download&collection_id=ebf8d50258b66b3c61f0f63aaccc622ab9568aee&writer=rdf2latex&return_to=Papillomaviridae


Los virus del papiloma son pequeños icosaédrica, virus no envueltos (! Desnudos) que varían en diámetro desde 52 hasta 55 nm. Se cree que la partícula de virión consta de 72 capsómeros pentaméricos dispuestas en una celosía superficie con un número de triangulación de T = 7. Es ordenado que pueden existir capsómeros tanto en la pentavalente y hexavalente estado hay 60 capsómeros hexavalente y 12 los pentavalentes. Acciones del Virus del Papiloma esta característica de capsómeros heterogéneos con su primo más cercano poliomavirus.
La imagen de arriba: Imagen del Virus del Papiloma Cápside Morfología generado por ordenador
Virus del Papiloma cápside se construye de dos proteínas virales: L1 y L2. L1, la proteína principal de la cápside, constituye el 80% del virión, mientras que el L2- en proteínas menor constituye el 20% restante.
Es muy bueno tener en cuenta que se trata de estas proteínas de la cápside viral que se utilizan para crear partículas similares a virus (VLP abreviada!) Para la nueva vacuna Gardasil contra el VPH tetravalente. Este recombinante altamente eficaz, la vacuna no infecciosa se produjo usando las principales proteínas de la cápside (L1) de las proteínas de las cuatro cepas de VPH que son la causa más común de cáncer cervical y verrugas genitales. Científicos más inteligentes en Merck han manipulado células de levadura para expresar las proteínas virales L1, que luego auto-ensamblan en VLP y crean una respuesta inmune humoral en humanos.

Historia y Taxonomía de Papillomaviridae

Las verrugas han sido de alrededor de ... bueno, básicamente para siempre. Los antiguos griegos y romanos eran maniquíes no sobre la naturaleza infecciosa de warts- pero no fue hasta el año 1900 que un filtrado libre de células se muestra para transmitir las lesiones benignas. Richard Shope investigó el virus del papiloma de conejo de rabo blanco y descubrió el primer virus tumoral de ADN en la década de 1930. Poco interesante de Papillomaviridae curiosidades: se cree que los conejos infectados con el virus del papiloma de conejo de rabo blanco son la fuente del animal "jackalope" rumoreado. Las verrugas protuberantes causadas por este virus crea un efecto corniforme.
La imagen de arriba: Un origen propuesto para el "Jackalope" animal-- en realidad, uno conejito enfermo
En los años 1950 y 1960, lamentablemente poco se ha trabajado en los papilomavirus, sin embargo, el área experimentó una especie de renacimiento edad molecular tras el advenimiento de la clonación molecular en la década de 1970.


Papovaviridae es una familia de virus pequeños (apróx. 50 nm) infectivos para una gran variedad de animales, incluyendo los humanos. Su nombre implica las patología que causa: papilomavirus + poliomavirus + agente vacuolante. Tienen una amplia distribución mundial.Se caracterizan por poseer un genoma con DNA de cadena doble como ácido nucleico de unos 8000 pares de bases;1 albergar dicha información genética en una cápside de 72 capsómetros2 y carente de envoltura viral y estructuralmente definida por unasimetría icosaédrica, de un tamaño de 45 a 55 nm; y por ensamblar los viriones maduros en el núcleo como compartimentocelular.Son conocidos por su capacidad de evadir el sistema inmune, en particular por acceso a tejidos privilegiados donde la inmunidad no es muy fuerte. Ese trofismo evolutivo les ha dado la habilidad de permanecer viables en el hospedador de por vida, en la mayoría de los casos. Los Papovaviridae son virus altamente cancerígenos, causando lesioneshiperplásicas y proliferativas, tanto malignas como benignas,3 en variados tejidos.


biología - biología sistemática


los virus : Nidovirales es un orden de virus que infectan a vertebrados. Presentan un genoma de ARN monocatenario de sentido positivo, por lo que se incluyen en el Grupo IV de la Clasificación de Baltimore. Comprende la familia Coronaviridae1 2 y los génerosArterivirus3 y Okavirus, cada uno en su propia familia.
Este orden contiene el virus con el genoma ARN no segmentando más largo conocido: el virus de la hepatitis del ratón (MHV) que tiene un genoma de 31,5 kb. El genoma el virus presenta la misma estructura que el ARNm eucariota. Por tanto, el virus puede utilizar algunas proteínas de la célula huésped durante la replicación y expresión genética que se produce en elcitoplasma. A diferencia de muchos otros virus, el virión no contiene ninguna polimerasa puesto que su genoma puede leerse directamente cuando entra por primera vez en la célula huésped como si fuese ARNm.
En este grupo de virus, las proteínas estructurales se expresan separadamente de las no estructurales. Las proteínas estructurales se codifican en la región 3' del genoma y se expresan a partir de un conjunto ARNm subgenómico. Los virus codifican una proteasa principal y entre una y tres proteasas accesorias que están principalmente involucradas en la expresión de los genes replicasa. Estas proteasas también son responsables de la activación/desactivación de proteínas específicas en el instante correcto del ciclo vital del virus y así garantizar que la replicación se produce en el momento oportuno. Todavía hay un gran número de proteínas que han sido identificadas en los genomas de los nidovirales pero cuya función todavía se desconoce.


Los Orthomyxoviridae son una familia de virus RNA que infectan a los vertebrados. Incluyen a los virus causantes de la gripe.Se caracteriza por presentar envuelta y ser isométrico, con la siguiente morfología (del interior al exterior):
  • Ribonucleoproteínas (8 segmentos en tipos A y B, 7 en C)
  • ARN-Pol dependiente de ARN
  • Proteína NS2
  • Proteína de la matriz
  • Glicoproteínas de membrana: Hemaglutinina (HA) y Neuraminidasa (NA)
La hemaglutinina (HA) es un trímero formado por tres polipéptidos cada uno de los cuales tiene una secuencia señal. Tras ella, aparece un dominio rico en sitios de glicosilación, y finalmente, una zona hidrófoba: el péptido fusogénico, que va a ser el responsable de la fusión de la membrana vírica con la celular para permitir la entrada a la célula. Por último, otra zona con la que se ancla a la membrana.
Se caracteriza por tener varios puentes disulfuro internos responsables de la estructura. Para que la proteína sea funcional, debe producirse un corte justo antes del péptido fusogénico. Si no se produce este corte, la proteína es afuncional y el virus no puede infectar. Las dos partes cortadas de la molécula siguen unidas por puentes disulfuro.
La neuraminidasa (NA) es un tetrámero formado por pequeños polipéptidos con una región de anclaje a membrana y una región globular funcional. Las zonas más expuestas funcionan en el reconocimiento del hospedador, pero también como determinantes antigénicos.El genoma está fragmentado en 8 moléculas (7 en el InfluenzavirusC): Las 6 primeras codifican una proteína cada una. Las 2 últimas, codifican dos proteínas cada una.
El fragmento 7 codifica la proteína de la matriz y una segunda proteína capaz de funcionar como canal iónico en la membrana (M2).
El fragmento 8 codifica 8 proteínas que mejoran la efectividad de la infección. Algunas zonas del genoma se aparean para ganar resistencia contra ARNasas celulares. Todos los fragmentos están unidos a nucleoproteínas. En el interior de la partícula, además, está la ARN-Pol, que es un complejo de tres proteínas codificadas por los fragmentos 1, 2 y 3.
El ARN del virus, sólo funciona como molde para la ARN-Pol si está unido a las nucleoproteínas. Se producen dos procesos de polimerización: Formación de ARNm y formación de ARN (+) como intermediario replicativo.


biología - biología sistemática


los virus : Mimiviridae es una familía de virus de doble cadena de ADN. Los virus en esta familia pertenecen a la superfamilia Virus nucleocitoplasmáticos de ADN de gran tamaño (NCLDV), un grupo que incluye miembros de las familias AsfarviridaeIridoviridae,Phycodnaviridae y Poxviridae y el género Dinodnavirus.


Los Mononegavirales son un orden de virus comprendiendo especies que tienen un genoma de ARN no segmentado, de sentido negativo.
Un número importante de enfermedades humanas, (parotiditisrabia) y las emergentes (fiebre hemorrágica ébola, enfermedad de borna, virus Hendra y virus Nipah, son causadas por virus de este orden.


Henipavirus structure.svg


biología - biología sistemática


los virus : Leviviridae es una familia de virus infectivos para bacterias. Contienen un genoma ARN monocatenario positivo y por lo tanto se incluyen en el Grupo IV de la Clasificación de Baltimore. Se caracterizan por una cápside carente de envoltura viral y estructuralmente definida por una simetría icosaédrica regular.Son virus isométricos, muy pequeños. Su cápsida tiene 180 subunidades de un único tipo de proteína. Portan, además, una proteína de maduración, indispensable para la correcta formación de la cápsida y el ensamblaje con el ARN, y también muy importante para el reconocimiento del hospedador.El genoma es muy pequeño (3-4Kilobases), y sólo tiene 4 genes: Proteína de maduración (Prot. A), Proteína de la cápsida, Replicasa (ADN-Polimerasa dependiente de ARN) y Proteína de lisis (Exclusiva de MS2)
Porta, además, secuencias específicas para el reconocimiento por parte de la replicasa. La proteína de lisis requiere un cambio en la fase de lectura respecto de las otras (Salto de +1 base), lo que le permite tener la información solapada con los otros genes.
El genoma, además, cuenta con zonas de complementariedad interna, lo que hace que se encuentre plegado. Los extremos 3’ y 5’ están protegidos por asociación a la proteína de maduración.La proteína A reconoce la célula hospedadora a través de sus pelos sexuales. El virus se une a ellos y se induce la entrada en la célula del ARN asociado a la prot. A. Una vez dentro, el ARN es leído como un mensajero por los ribosomas celulares que van a traducir su información.
Ahora bien, el virus va a necesitar que la información se traduzca en cantidades distintas. Será necesaria mucha traducción de la proteína estructural, pero menos del resto. Se usa un mecanismo de regulación que tiene que ver con la estructura terciaria del ARN.
Al principio, la región que codifica la proteína A está bloqueada, de modo que ésta no se sintetiza.
Sí se sintetiza, por el contrario, la proteína estructural. Conforme los ribosomas avanzan leyendo esta región, se va deshaciendo la estructura sterciaria, facilitando sutraducción, y liberando el sitio de inicio de la traducción del gen de la replicasa.
Se están traduciendo la proteína estructural y la replicasa, pero como se necesita menos replicasa, en cuanto hay suficiente prot. estructural, se asocian varios monómeros y bloquean la traducción de la replicasa.
La replicasa ejerce su función, que es replicar la cadena de ARN (+) a una de ARN (-), y a partir de esta, replicar nuevas copias de la cadena de ARN (+), que pueden funcionar como mensajeros o comenzar a encapsidarse.
La proteína de maduración se traduce durante el proceso de replicación de la hebra – a una +. Hay un momento en el proceso en el que la cadena naciente, tiene libre el sitio de inicio de la traducción, al que se une un ribosoma.


Luteoviridae es una familia de virus que infectan plantas. Contienen un genoma ARN monocatenario positivo y por lo tanto se incluyen en el Grupo IV de la Clasificación de Baltimore. El virión no presenta envoltura, la nucleocápside tiene simetríaicosaédrica y un diámetro de 26-30 nm. El genoma tiene una longitud de 5641 a 6900 pb y se replica en el citoplasma. La familia incluye los siguientes géneros:


biología - biología sistemática


los virus : El herpesvirus debe su nombre al término griego herpein (ἕρπειν), reptar o arrastrar, haciendo alusión a la facultad de estosagentes infecciosos microscópicos de ser fácilmente contagiados y transmitidos de una persona a la otra y de recurrencia crónica. - .................................:http://es.wikipedia.org/w/index.php?title=Especial:Libro&bookcmd=download&collection_id=05469d30fa76d81224716af9e3d555497f772c6a&writer=rdf2latex&return_to=Herpesviridae


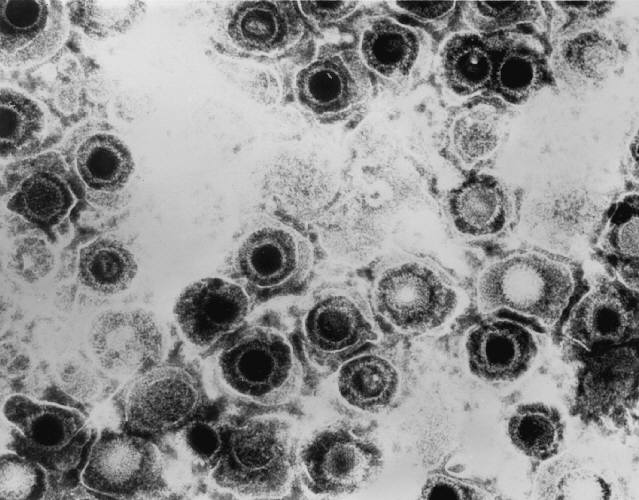
Transmisión micrografía electrónica de virus herpes simplex. Algunos nucleocápsides están vacíos, como se muestra por la penetración de la mancha denso en electrones.http://phil.cdc.gov/PHIL_Images/08301998/00014/B82-0474_lores.jpg

Por Michael Gallaher El herpes es una familia de virus de ADN llamados Herpesviridae. La familia de los herpes virus consta de tres familias de virus; Alphaherpesviridae, Betaherpesviridae, y Gammaherpesviridae. Entre estas familias son muchos virus comúnmente conocidos que son agentes causantes de muchas enfermedades, tales como HSV-1 y HSV-2 para el herpes labial y las verrugas genitales, varicela zoster de la varicela y el herpes zóster, y el virus Eppstein-Barr para la mononucleosis. Virsues herpes también tienden a tener latente, infecciones en los organismos infectados, recurrente en el que el virus permanece en alguna parte del organismo infectado (Gupta, 2007) . Los virus de la familia herpes son muy comunes, con al menos el 90% de las personas dentro de los Estados Unidos después de haber sido infectados con al menos una forma de Herpesviridae (CDC, 2006) .


De estas familias virales, los virus del herpes animales que causan la enfermedad son de la familia Alphaherpesviridae. Los ejemplos más conocidos son los de herpes herpes simplex virus, HSV-1 y HSV-2. HSV-1 es el patógeno causante de la mayoría de úlceras bucales orales, mientras que HSV-2 es el agente causal de las verrugas genitales. Se cree que más del 50% de los adultos en los Estados Unidos tienen HSV-1, y que casi el 20% tienen HSV-2 (CDC, 2010) . La infección generalizada de la población hace que el herpes un buen objetivo para la investigación médica. Otro prometedor campo de investigación que ha desarrollado más recientemente es la posibilidad de utilizar un HSV rediseñado como un vector tratamiento para otras enfermedades, como las diversas formas de cáncer (Varghese, 2002) .

Patología

Infección del labio superior labial Herpes (HSV-1): Fig 1.Fotógrafo original fue el Dr. Hermann de los CDC. El permiso para el uso:. PD-USGOV-HHS-CDChttp://phil.cdc.gov/Phil/details.asp

HSV-1 y HSV-2 son a la vez transmiten a través del contacto de piel a piel o por el contacto con los fluidos corporales de una persona infectada.HSV-1 infecta principalmente las áreas de la boca, la garganta, la cara, los ojos y el sistema nervioso central, mientras que el VHS-2 infecta principalmente los genitales. Sin embargo, ambas variantes pueden infectar a todas las áreas (Gupta, 2007) . La transmisión también puede ser vertical a través de embarazo, y la infección neonatal por HSV es más grave que la infancia o un adulto. Una vez infectado, el VHS causa ampollas en la piel que se llenan de partículas de virus activos (figura 1). El contacto con estas ampollas lleva el mayor riesgo de transmisión. Sin embargo, estas ampollas no son permanentes, que dura normalmente de unas pocas semanas. La infección luego entra en una etapa latente, cuando la persona infectada es asintomática. Aunque asintomática, la persona infectada todavía puede transmitir el virus. Durante la etapa latente, HSV invade las neuronas periféricas y permanece en los núcleos de estas células (Gupta, 2007) . Finalmente, el virus se activa y re-infección comienza, como viriones se mueven fuera de los núcleos neuronales y hacia fuera para volver a infectar las áreas epiteliales. No se sabe exactamente qué provoca el resurgimiento del virus. Curiosamente, una vez infectadas otras áreas se vuelven resistentes a la infección: Si se produce una infección oral de HSV-1, a continuación, las infecciones no se producen en los dedos (Gupta, 2007) . Además, la contratación de una variante confiere cierta protección contra el otro, como los infectados con HSV-1 son algo resistentes a HSV-2, mientras que los infectados con HSV-2 son resistentes a HSV-1 (Gupta, 2007) . Independientemente de qué cepa se contrae, el sistema inmunológico no erradica la infección.Re-activaciones de virus a menudo se vuelven menos graves y menos frecuentes con el tiempo, con algunos individuos infectados convertirse completamente asintomático (Gupta, 2007) .

Estructura y Genómica

Figura 2: Cryo-EM tomograpgy del portal de la cápside formada por un 12-mer de la proteína UL6. Las formas de portal en un vértice de la cápside. Cardone et al., 2007http://www.sciencedirect.com/science/article/pii/S004268220600804X

Estructura del virión: Todos los virus del herpes animales comparten una estructura del virión similares, que consiste en una proteína de la cápside que contiene el ADN viral que está rodeado por una envoltura de membrana que está conectado a la cápside por un tegumento proteína(Mettenleiter, 2006) . HSV es un virus basado en el ADN; tiene una lineal, de doble hebra del genoma. La cápside proteína está en una forma icosaédrica de aproximadamente 15 nm de espesor y 125 nm de diámetro (Newcomb et al, 1996) . Hay cinco proteínas conservadas que forman cápsides de herpes: UL19, que es la principal proteína de la cápside que se encuentra en todas las cápsides de herpes, UL18 y UL38, que son proteínas que forman triplexes que interactúan con y ayudan a estabilizar cápsides adyacentes, UL35, que cubre todo hexones, y UL6, que forma el portal a través del cual se inyecta el genoma viral en el núcleo (Fig 2). La cápside está conectado a la envoltura de membrana a través del tegumento viral, con la que estas proteínas de la cápside asociado (Mettenleiter, 2006) . También se han encontrado viriones del herpes para contener proteínas celulares, incluyendo los componentes del citoesqueleto de actina y tubulina, proteínas de choque térmico Hsp70 y Hsp90, y anexina. Sin embargo, no se sabe exactamente qué papel juegan estas proteínas celulares y por qué son reclutados durante la replicación de los viriones. Estas proteínas celulares son abundantes en las células infectadas durante la replicación del virus completo, y por lo que es incierto si estas proteínas son reclutados al azar como "material de relleno", o si tienen un propósito, como el cebado células recién infectadas para la síntesis de los componentes de viriones (Mettenleiter, 2006 ) .


Genómica HSV: El genoma de HSV es un genoma relativamente largo, con HSV-1 y HSV-2 cada codificación al menos 74 genes (McGeoch et al, 2006) . El genoma del herpes es lineal, y consta de dos regiones principales, la región larga única (UL), y la única región corta (US). La larga región contiene 56 genes, mientras que la región a corto contiene 12 genes. Los genes en ambas regiones codifican para todos los componentes necesarios estructurales del virus, incluyendo la cápside, tegumento, y proteínas de la envoltura, así como genes que controlan los procesos de replicación viral y la capacidad infecciosa. Herpes utiliza el ARN polimerasa II del huésped infectado para transcribir sus genes (McGeoch et al, 2006) . Los genes se pueden clasificar en genes virales temprano inmediato, temprano, y tardíos. Genes tempranos inmediatos codifican para la transcripción de las proteínas que regulan la expresión de genes tempranos y tardíos, y estas proteínas son también parte del tegumento que entra en la célula después de la cápside (McGeoch et al, 2006) . Los primeros genes se expresan después de los genes tempranos inmediatos, y estos genes controlan la biosíntesis de enzimas implicadas en la replicación del ADN, así como la producción de diversas glicoproteínas que comprenden la envoltura del virión. Los genes tardíos codifican principalmente para las proteínas que forman la cápside y tegumento y forman la partícula del virión (McGeoch et al, 2006) .