miércoles, 1 de julio de 2015

anatomía humana

Sistema inmunitario

Una abzima (de antibody, anticuerpo en inglés y enzima) también llamada catmab (de catalytic monoclonal antibody, ‘anticuerpo catalítico monoclonal’), es un anticuerpo monoclonal con actividad catalítica. Las moléculas que se modifican para adquirir nuevas actividades catalíticas se llaman sinzimas. Las Abzimas son normalmente constructos artificiales, pero también se encuentran en los organismos normales y en humanos, como en el caso de los autoanticuerpos antipéptido vasoactivo intestinal, y en el caso del lupus eritematoso en el que los autoanticuerpos se pueden unir al ADN e hidrolizarlo. Las abzimas son potenciales herramientas debiotecnología, por ejemplo, para efectuar determinadas manipulaciones en el ADN.
Las enzimas funcionan disminuyendo la energía de activación del estado de transición y catalizando así la formación de un intermediario que de otro modo sería menos favorable entre reactivos y productos. Si se desarrolla un anticuerpo contra una molécula estable que es semejante a un intermediario inestable de otra reacción (que potencialmente no está relacionada), el anticuerpo desarrollado se unirá enzimáticamente a él y estabilizará el estado intermediario, catalizando de ese modo la reacción. De este modo se produce un tipo nuevo de enzimas.


La superfamilia de las inmunoglobulinas (IgSF) es un extenso grupo de proteínassolubles y de superficie celular que están implicadas en procesos de reconocimiento, unión o adhesión celular de las células. La asignación de una molécula a esta superfamilia se basa en que comparten rasgos estructurales con las inmunoglobulinas (también conocidas como anticuerpos). Todas ellas poseen un dominio conocido como dominio o plegamiento inmunoglobulina. Entre los miembros de la IgSF se incluyen receptores de antígenos en la superficie celular, correceptores y moléculas de coestimulación del sistema inmunitario, moléculas imlplicadas en la presentación de antígeno a los linfocitos, moléculas de adhesión celular y ciertos receptores de citocinas. Habitualmente están asociadas con funciones del sistema inmunitario.- ..................................................:https://es.wikipedia.org/w/index.php?title=Especial:Libro&bookcmd=download&collection_id=98d7ab768f7a4adfd5cb7e763f27cfb8958c6631&writer=rdf2latex&return_to=Superfamilia+de+las+inmunoglobulinas

Superfamilia de las Inmunoglobulinas: Regulación del Tráfico Celular en la Inflamación Moléculas

Esta superfamilia comprende aquellas proteínas que tienen uno o más dominios extracelulares homólogos a las inmunoglobulinas. Pueden subdividirse en:
·Tipo C1: involucradas en el reconocimiento de los antígenos; se incluyen aquí los receptores antigénicos de los linfocitos T y B, los anticuerpos, y las moléculas del complejo mayor de histocompatibilidad.
·Tipo C2: proteínas de adhesión celular y fijadoras del complemento (Tabla 3); incluye moléculas de acciones muy diversas, desde adhesión neuronal (NCAM), coestimulación celular (CD28, CD80, CD86, CTLA-4), y moléculas de adhesión que en algunos casos son ligandos para las integrinas (aunque en algunos casos realizan interacciones homofílicas, como el CD31). Estas moléculas están involucradas en la circulación y tráfico de los leucocitos a los órganos linfoides y a los sitios de daño tisular por medio de interacciones célula-célula y célula-matriz extracelular.
Tabla 3. Superfamilia de las inmunoglobulinas
NombreNombre alternoDistribuciónContra receptorRegulación
ICAM-1CD54Endotelio, fibroblastos
epitelio, monocitos
linfocitos, cél. dendríticas
condrocitos
LFA-1, Mac-1
CD43 (leucosialina)
Expresión constitutiva;
aumenta por IL-1, TNF-a
IFN-g, LPS.
Disminuye por IL-6
ICAM-2CD102Endotelio, linfocitos
monocitos, plaquetas
LFA-1Expresión constitutiva
ICAM-
3/ICAM-R
CD50Linfocitos, monocitos
polimorfonucleares
LFA-1, aD/CD18Aumenta la expresión
con la activación
VCAM-1CD106Endotelio, monocitos
células dendríticas
fibroblastos, estroma
médula ósea
VLA-4, a4b7, LPAM-1Aumenta la expresión
por IL-1, TNF-a,IL-4
IL-13, LPS
LFA-2CD2Linfocitos T, NKLFA-3, CD59, CD48Expresión constitutiva
LFA-3CD58Endotelio, Leucocitos
células epiteliales
LFA-2
—-
PECAM-1,
EndoCAM
CD31Endotelio, plaquetas
leucocitos, músculo
CD31, Heparina, aVb3Tiene FORMASmuy
polimórficas
MadCAM-1
—-
Endotelio de mucosas,
vénulas de lámina propia
y placas de Peyer, bazo
LPAM-1 (a4b7)
L-selectina
expresión aumentada por
IL-1, TNF-a, IFN-g
NCAM
—-
Céls. Neurales, gliales
corazón, músculo, riñón
NK, algunos T activados
NCAM, heparán sulfato
heparina, aVb3
—-
Las moléculas Tipo C2 incluyen un número variable de dominios extracelulares tipo inmunoglobulina, con secuencias de cisteínas conservadas que FORMANpuentes disulfuro para estabilizar la estructura terciaria de la molécula.
Cinco miembros de las superfamilia de las Igs están expresadas constitutivamente por las células endoteliales, y se encuentran involucradas en la adhesión firme de los leucocitos a ellas: ICAM-1, ICAM-2, VCAM-1, PECAM-1 y MAdCAM-1. La expresión de la mayoría de estas moléculas es regulada positivamente por varias citoquinas, llevando a un incremento en la unión fuerte de los leucocitos al endotelio durante los procesos inflamatorios. Esa adhesión fuerte se realiza por la interacción de las moléculas tipo C2 con las integrinas b1, b2 y b7 expresadas sobre los leucocitos.
Las interacciones del CD28 y CTLA-4 con CD80 (B7-1) y CD86 (B7-2) tienen un interés muy particular pues hacen parte fundamental del sistema de coestimulación desplegado durante la activación de los linfocitos T; las evidencias orientan a proponer un rol estimulador para el CD28, mientras que la señalización generada por CTLA-4 sería inhibidora para la célula T.

Proteínas de la Matriz Extracelular

En este grupo encontramos proteínas como la fibronectina, la laminina y el colágeno. Estas moléculas intervienen en mecanismos de adhesión célula-matriz extracelular, estimulación de la movilidad hacia los sitios de inflamación y activación de los fagocitos.
Papel de las moléculas de adhesión en el
reclutamiento de los neutrófilos
Rodamiento y adhesión laxa
La interacción inicial de los neutrófilos (PMN) con el endotelio es un proceso aleatorio, pero se incrementa notablemente en los sitios de inflamación o trauma por una alteración en el flujo sanguíneo local. Cuando los PMN hacen el rodamiento sobre la pared vascular, la primera interacción con el endotelio se hace a través de moléculas de la familia de las selectinas; la L-selectina se expresa constitutivamente en la membrana de los leucocitos; la P-selectina se encuentra almacenada en el interior de las células endoteliales y las plaquetas, y se expresa en la superficie celula luego de la activación; la E-selectina se sintetiza de novo y se expresa en la membrana de las células endoteliales también cuando éstas han sido activadas; dicha activación para la expresión de las selectinas P y E se debe a sustancias como el PAF, la trombina, la histamina, la IL-1, el TNF y otros mediadores.
Los ligandos de las selectinas son proteínas tipo mucinas que contienen carbohidratos sializados y fucosilados. El proceso de rodamiento de los fagocitos sirve para poner estas células en estrecho contacto con el endotelio y para disminuir la velocidad de su paso por las regiones de daño tisular e inflamación.
Cuando el PMN entra en contacto con el endotelio, la L-selectina interactúa por unos pocos milisegundos con sus ligandos expresados sobre el endotelio (CD34 y otras mucinas sializadas), mientras la P-selectina y la E-selectina hacen lo mismo con las lectinas expresadas por el PMN (Sialil Lewis-X); esta interacción transitoria se denomina adhesión laxa y permite el rodamiento del PMN sobre el endotelio; sin embargo, no es lo suficientemente fuerte para permitir una adhesión firme de los PMN al endotelio y la transmigración a través de sus células.
Activación del PMN y adhesión firme
El proceso de rodamiento del PMN permite el contacto de éste con sustancias activadoras secretadas por el endotelio y los tejidos subyacentes (citoquinas, derivados de la coagulación y el complemento) depositadas en el glicocálix de las células endoteliales. Los PMN tienen en su superficie receptores de alta afinidad para estos factores activadores (en su mayoría receptores para agentes quimiotácticos, del tipo proteínas de siete pasos transmembrana acoplados a proteína G); como parte de las respuestas a esta activación, las cadenas de las Beta 2 integrinas leucocitarias que estaban dispersas en la membrana del PMN se agrupan el la zona de contacto con el endotelio y FORMAN dímeros funcionalmente activos.
La adhesión firme se origina por una uniones ligando-receptor fuertes y estables entre moléculas de la superfamilia de las inmunoglobulinas (ICAM-1, ICAM-2) expresadas en el endotelio activado y las Beta 2 integrinas (LAF-1, MAC-1 y p150,95); la LFA-1 y el MAC-1 permiten la adhesión firme de los PMN al endotelio, pero la MAC-1 está también involucrada en el proceso de transmigración endotelial y quimiotaxis por sus interacciones con moléculas del intersticio endotelial y la matriz extracelular.
Cuando las integrinas se unen a los ICAM-1 e ICAM-2 expresados en el endotelio, originan una adhesión firme del PMN y el paro completo de su movimiento; el ICAM-1 se expresa en el endotelio luego de su activación, mientras que el ICAM-2 es de expresión constitucional en estas células.
Transmigración endotelial y quimiotaxis
El paso del PMN a través de los espacios inter endoteliales también se lleva a cabo por interacciones entre integrinas y moléculas de la superfamilia de las inmunoglobulinas. El MAC-1 (CD11b/CD18) y el PECAM-1 (CD31) son las moléculas de adhesión más fuertemente involucradas en este proceso, a través de uniones heterofílicas y homofílicas (CD31: CD31).
Cuando el PMN alcanza la matriz extracelular, se inicia la quimiotaxis por medio de interacciones entre las integrinas de esta células y moléculas del tejido extracelular; en este proceso cumplen la función más destacada el MAC-1 y algunas moléculas de las Beta 1 integrinas. La quimiotaxis de los PMN es un incremento en la polarización de su movimiento hacia los sitios de inflamación, regulado por un gradiente de factores quimiotácticos originados en el foco inflamatorio. Los factores quimiotácticos más importantes son productos derivados de las bacterias (FMLP), algunas citoquinas proinflamatorias (como la IL-8, y el PAF), el leucotrieno B4 y péptidos originados por la activación del complemento (C5a y C3a); ellos interactúan con receptores específicos de membrana de la familia de receptores tipo rodopsina (serpinas, con siete porciones transmembrana) que se asocian en la porción intracelular con una proteína G, la cual al activarse inicia la transducción de señales activando proteínas de la familia de la fosfolipasa C.

Modelos Fisiopatológicos Relacionados con las Moléculas de Adhesión

El exceso, defecto o ausencia de las moléculas de adhesión se relaciona con eventos anormales que participan en el desarrollo de algunas enfermedades; por tanto, éstas son usadas como modelos para el ESTUDIO y análisis de la función y estructura de dichas moléculas. A continuación haremos referencia a algunos modelos de interés.
Deficiencia de adhesión leucocitaria Tipo I
Esta es una enfermedad autosómica recesiva, en la cual existe un defecto en las 3 integrinas leucocitarias CD11/CD18 por mutaciones en el gen que codifica para la cadena b2 común (CD18, cromosoma 21q22.3). Los defectos puede llevar a la ausencia total de la cadena CD18 o alteraciones que afectan su estructura o las interacciones con la subunidad alfa.
Se habla de un fenotipo severo cuando se expresan menos del 0.3% de la cantidad normal de las b2 integrinas, y de un fenotipo moderado cuando los niveles de dichas integrinas se encuentran entre el 2.5 y el 11% del valor normal.
Este desorden se caracteriza por anormalidades en las actividades dependientes de la adhesión leucocitaria, especialmente a nivel de la función del neutrófilo: alteraciones en la adhesión, quimiotaxis y la fagocitosis de los microorganismos opsonizados con C3bi (ligando del MAC-1). En los sitios de infección es característico la ausencia de respuesta inflamatoria franca.
Los pacientes que presentan esta afección se caracterizan por: retardo en la caída del cordón umbilical y onfalitis; infecciones bacterianas y micóticas recurrentes severas; úlceras necróticas sin presencia de pus; gingivitis y periodontitis; infecciones del tracto respiratorio superior e inferior; y abscesos cutáneos y celulitis.
Los agentes infecciosos más frecuentemente aislados son el Staphylococcus aureus, bacterias gram negativas, Candida albicans y Aspergillus spp.
En los ESTUDIOS de laboratorio se pueden encontrar: neutrofilia aun en ausencia de infección activa; quimiotaxis deficiente in vivo e in vitro; ausencia de adhesión al vidrio, plástico y al cultivo con células endoteliales.
El diagnóstico se confirma por medio de citometría de flujo, en la cual se evalúa la expresión del CD18 en la superficie de los leucocitos. También se puede hacer la caracterización molecular de los diferentes defectos implicados y el diagnóstico prenatal (en neutrófilos del cordón umbilical).
Deficiencia en la adhesión leucocitaria Tipo II
Se origina por un defecto en la adhesión mediada por las selectinas; la causa es una falla en el metabolismo de la fucosa, que lleva a una alteración en la adición de estos carbohidratos a las proteínas que son ligandos para las selectinas, como es el caso del Sialyl Lewis-X. Se asocia, además, con la ausencia del antígeno H en la superficie del glóbulo rojo, lo cual origina el fenotipo Bombay (hh).
Los pacientes presentan dismorfismo craneofacial, déficit neurológico, neutrofilia, deficiente respuesta inflamatoria ante las noxas, e infecciones recurrentes respiratorias. In vitro se encuentran defectos en quimiotaxis, la fagocitosis, y la agregación de las células fagocíticas.
En los afectados por esta entidad se ha observado disminución de la VIDA media de los neutrófilos circulantes, aproximadamente en un 50% con respecto al valor normal; se desconocen los defectos moleculares subyacentes.
Enfermedades inflamatorias crónicas
Observaciones de algunas enfermedades dermatológicas como la psoriasis, han llevado a postular que la distribución incorrecta de las moléculas de adhesión (por ejemplo: las integrinas) puede llevar a un fenotipo de tipo psoriásico. Se han realizado experimentos en ratones transgénicos que expresan específicamente las b1 integrinas en las capas suprabasales de la epidermis, encontrando manifestaciones clínicas y hallazgos histológicos compatibles con la psoriasis.
En un modelo de artritis se han llevado a cabo trabajos experimentales en los cuales la inyección intraarticular de un antígeno soluble se induce una inflamación aguda, que es seguida por una sinovitis crónica similar a la que se observa en la artritis reumatoidea. La administración de anticuerpos monoclonales (anti E-selectina o anti ICAM-1) pre y post la inyección articular, inhibe la FORMACIÓN tanto del infiltrado agudo como del infiltrado crónico. Se ha demostrado que la utilización de diferentes fármacos en el tratamiento de la artritis reumatoidea modifica la expresión de las moléculas de adhesión; por ejemplo, en el caso de los corticosteroides, se ha observado que disminuyen la expresión de la E-selectina y del ICAM-1.
La expresión del ICAM-1 en la superficie de las células endoteliales se aumenta por los estímulos inflamatorios de diverso origen, como los derivados de las infecciones o los presentes en las enfermedades alérgicas (asma, dermatitis atópica). En un modelo desarrollado en ratones, se aplicaron anticuerpos monoclonales anti-LFA-1 y anti-ICAM-1, los cuales suministrados previamente a la sensibilización con un hapteno evitaron la inducción de la hipersensibilidad por contacto.
Los eosinófilos, pero no los neutrófilos, expresan el VLA-4 que se une al VCAM-1, explicando el reclutamiento selectivo de los eosinófilos en la inflamación alérgica. La utilización en modelos animales de anticuerpos monoclonales anti-VCAM-1 ha mostrado utilidad terapéutica potencial para el manejo de enfermedades autoinmunes e inflamatorias, porque regula el tráfico de eosinófilos, monocitos y linfocitos.
Enfermedades infecciosas
En el modelo del resfriado común se observó que el rhinovirus infecta las células del epitelio nasal utilizando el ICAM-1 como receptor. En estados de inflamación crónica como los hallados en las enfermedades alérgicas, el aumento en la expresión del ICAM-1 sobre las células epiteliales favorece la colonización por este virus y desencadena los síntomas agudos de alergia. En estudios realizados en chimpancés, se demostró que una forma soluble del ICAM-1 prevenía la infección por el rhinovirus.
En la fisiopatología de otras enfermedades infecciosas y parasitarias, los microorganismos poseen ciertas proteínas en su superficie que pueden ser utilizadas como ligandos para las moléculas de adhesión celular y así invadir al hospedero.

anatomía humana

Sistema inmunitario

Los anticuerpos (también conocidos como inmunoglobulinas, abreviado Ig) son glicoproteínas del tipo gamma globulina. Pueden encontrarse de forma soluble en la sangre u otros fluidos corporales de los vertebrados, disponiendo de una forma idéntica que actúa como receptor de los linfocitos B y son empleados por el sistema inmunitario para identificar y neutralizar elementos extraños tales como bacterias, virus o parásitos.- ...............................................:https://es.wikipedia.org/w/index.php?title=Especial:Libro&bookcmd=download&collection_id=a87071a8b813edf57fa15fa58b4fe8bd77a079f9&writer=rdf2latex&return_to=Anticuerpo

ANTICUERPOS
Los anticuerpos constituyen glucoproteínas plasmáticas globulares, llamadas Inmunoglobulinas. Son moléculas formadas por los linfocitos B maduros. La función del anticuerpo consiste en unirse al antígeno y presentarlo a células efectoras del sistema inmune. Esta función está relacionada con la estructura de los distintos tipos de inmunoglobulinas.
Estructura de las Inmunoglobulinas
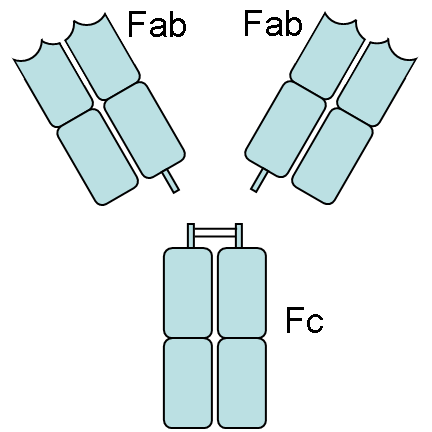
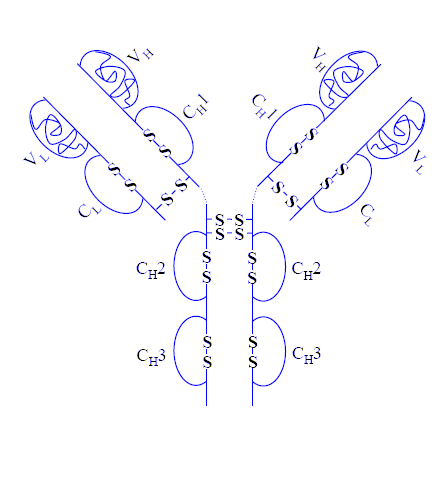
Son proteínas globulares de gran peso molecular, formadas por 4 cadenas polipeptídicas, dos pesadas, llamadas H (heavy), y dos ligeras, denominadas L (light). Estas cadenas se unen mediante puentes disulfuro, uno entre las cadenas L y H, y dos entre las cadenas H. Estas cadenas proteicas presentan radicales glucídicos.
Existen dos tipos de cadenas L (l y k) y cinco tipos de cadenas H (a, d, e, g y m), que dan lugar a los cinco isótopos de inmunoglobulina existentes (A, D, E, G y M).
Las cadenas H y L presentan dos regiones, o dominios, diferenciados: el dominio variable, V, y el dominio constante, C. El dominio variable es el responsable de reconocer al antígeno y unirse a él, ya que ahí se encuentra el paratopo. El dominio constante se une a las células del sistema inmune para activarlas.
En las cadenas H aparece una zona denominada región bisagra. Esta región posee la característica de ser muy flexible, permitiendo adquirir distintos ángulos entre las regiones V y C, y entre los brazos de la inmunoglobulina.
Dibujo esquemático de la estructura de una inmunoglobulina 
Existe una gran variedad de anticuerpos, tantos como antígenos. Esta gran variedad se obtiene como consecuencia de la reordenación y la mutación de los genes que codifican la región V.
  • La reordenación, o recombinación somática, es un mecanismo que sólo ocurre en un momento temprano del desarrollo de los linfocitos B. Los genes que codifican para la región V y C, que se encuentran separados en todas las células, se reordenan para juntarse , en el caso de los linfocitos B. Cuando estos genes se juntan reciben el nombre desegmentos génicos. Los segmentos génicos pueden combinarse entre sí, llegando a generar, aproximadamente 3.400.000 regiones V distintas. Esta gran variedad de combinaciones recibe el nombre dediversidad combinatorial.
  • La mutación, o hipermutación somática, que se produce en esta zona del material genético corresponde a adiciones o sustracciones de bases nitrogenadas en los segmentos génicos que codifican para la región V.
Todas estas variaciones pueden generar una inmunoglobulina no funcional. Cuando se producen este tipo de reordenaciones se habla de reordenamiento no productivo.
El proceso de recombinación y mutación está muy regulado, de forma que cada linfocito B sólo expresa un gen reordenado de la cadena H y otro de la cadena L. Así, cada linfocito produce un único tipo de anticuerpo.

Tipos de inmunoglobulinas
Los isótopos de inmunoglobulina que aparecen en la especie humana son las inmunoglobulinas A, D, E, G y M.


  • Inmunoglobulina G: Es la más abundante (80% del total de inmunoglobulinas). Se une rápidamente con macrófagos y neutrófilos, provocando la destrucción del microorganismo. Puede atravesar la barrera placentaria y se secreta en la leche materna. Por ello, es responsable de la inmunidad fetal y la del recién nacido.
 

  • Inmunoglobulina A: corresponde al 13% del total de inmunoglobulinas. Se encuentra específicamente ensecreciones serosas y mucosas, como son la leche o las lágrimas. Actúa protegiendo la superficie corporal y los conductos secretores. Genera, junto con la inmunoglobulina G, la inmunidad al recién nacido, al encontrarse en la leche.
 

  • Inmunoglobulina M: representa el 6% del total de inmunoglobulina. Aparece en los linfocitos B naïve unida a su membrana plasmática. Se manifiesta en la respuesta primaria activando el sistema del complemento.
 

  • Inmunoglobulina D: aparece en muy baja concentración (1%). Son las primeras inmunoglobulinas sintetizadas por los linfocitos B naïve. Su función puede estar relacionada con la activación de estas células. Su estructura es similar a la estructura de la inmunoglobulina G, aunque varía en la posición de los restos glucosídicos de las cadenas proteicas.
 

  • Inmunoglobulina E: se encuentra en concentraciones muy bajas en el suero y secreciones al exterior (0'002%). Sin embargo, su concentración aumenta en los procesos alérgicos.
 

Funciones de las inmunoglobulinas
La principal función de los anticuerpos consiste en reconocer y unirse al antígeno, para la destrucción de éste. Para conseguir este fin, el dominio constante de la inmunoglobulina puede activar los siguientes mecanismos:
  • Activación del sistema del complemento, que termina con la lisis del microorganismo.
  • Opsonización de los microorganismos. Los anticuerpos se unen al antígeno, presentándolo a un macrófago para su destrucción.
  • Precipitación de toxinas disueltas en el plasma. Así, son fácilmente destruidas por los macrófagos.
  • Aglutinación de antígenos en una determinada zona, facilitando la acción de los fagocitos y los linfocitos.
  • Activación de linfocitos.


Anticuerpos e inmunoglobulinas

Las Inmunoglobulinas son básicamente las proteínas que funcionan como los anticuerpos. Los términos anticuerpo e inmunoglobulina son de uso frecuente alternativamente.
Las Inmunoglobulinas se encuentran en sangre y otros tejidos y líquidos. Son hechas por las células de plasma que se derivan de las células de B del sistema inmune. Las células de B del sistema inmune se convierten en células de plasma cuando son activadas por el atascamiento de un antígeno específico en sus superficies del anticuerpo. En algunos casos, la acción recíproca del Linfocito B con una célula de ayudante de T es también necesaria.

Anticuerpos y antígenos

Los Antígenos clásico se definen como cualquier substancia no nativa que saque una inmunorespuesta. También se llaman los inmunógenos. La región específica en un antígeno que un anticuerpo reconoce y los lazos a se llaman el epitopo, o determinante antigénico.
Un epitopo se compone generalmente de una cadena larga del aminoácido 5-8 en la superficie de la proteína. El encadenamiento de aminoácidos no existe en una estructura dimensional 2 sino aparece como estructura dimensional 3. Un epitopo se puede reconocer solamente en su formulario como existe en la solución, o su formulario nativo 3D. Si el epitopo existe en un único encadenamiento del polipéptido, es un epitopo contínuo, o lineal. El anticuerpo puede atar solamente a los fragmentos o a los segmentos desnaturalizados de una proteína o a la proteína básica nativa.

Tipos de anticuerpos y de sus estructuras

El Suero que contiene los anticuerpos antígeno-específicos se llama antisuero. Hay cinco clases de inmunoglobulinas incluyendo IgM, IgG, IgA, IgD, e IgE.
La estructura básica de todos los anticuerpos es lo mismo. Hay cuatro encadenamientos del polipéptido ligados por los bonos de disulfuro. Estos encadenamientos de cuatro polipéptidos forman una estructura molecular simétrica.
Hay dos mitades idénticas con los puntos de enlace del antígeno entre los extremos de los encadenamientos pesados y pálidos en ambas caras. Hay una charnela en el centro entre los encadenamientos pesados para permitir adaptabilidad a la proteína. Los dos encadenamientos pálidos son idénticos el uno al otro. Contienen alrededor 220 aminoácidos mientras que los encadenamientos del tirón tienen 440 aminoácidos.
Hay dos tipos de encadenamiento pálido entre todas las clases de la inmunoglobulina, de un encadenamiento de la lambda y de un encadenamiento de la kappa. Ambos son similares en la función. Cada tipo de inmunoglobulina tiene un tipo diferente de encadenamiento pesado.

Funciones del Anticuerpo

Los lazos del anticuerpo a los antígenos específicos. Esto hace señales las otras células del sistema inmune para librarse de los microbios invasores. La fuerza de atar entre el anticuerpo y un antígeno en un único punto de enlace se conoce como la afinidad del anticuerpo para el antígeno. La afinidad entre el anticuerpo y el punto de enlace del antígeno es determinada por el tipo de bono formado.
Puesto Que un antígeno puede tener diversos epitopos del múltiplo, varios anticuerpos pueden atar a la proteína. Cuando dos o más puntos de enlace del antígeno son idénticos, un anticuerpo puede formar un bono más fuerte con el antígeno.


anatomía humana

Sistema inmunitario

Un anticuerpo monoclonal es un anticuerpo homogéneo producido por una célula híbrida producto de la fusión de un clon de linfocitos B descendiente de una sola y única célula madre y una célula plasmática tumoral.
Los anticuerpos monoclonales (en acrónimo mAB, de la frase en inglés con idéntico significado que en español: monoclonal antibody), son anticuerpos idénticos porque son producidos por un solo tipo de célula del sistema inmune, es decir, todos los clones proceden de una sola célula madre. Es posible producir anticuerpos monoclonales que se unan específicamente con cualquier molécula con carácter antigénico. Este fenómeno es de gran utilidad en bioquímica, biología molecular y medicina.- .......................................................:https://es.wikipedia.org/w/index.php?title=Especial:Libro&bookcmd=download&collection_id=dcbf02976737da8dc5e061289219a97315ec8075&writer=rdf2latex&return_to=Anticuerpo+monoclonal

IntroducciónLos anticuerpos monoclonales son una poderosa herramienta para el diagnóstico de laboratorio y un instrumento cada vez más utilizado en el tratamiento de diversas enfermedades.
DesarrolloEl descubrimiento y caracterización de los anticuerpos tiene una larga historia, que es la de la propia inmunología. En este artículo se hace una introducción histórica sobre la inmunidad humoral hasta el hallazgo de los anticuerpos monoclonales y se revisan conceptos relativos a la estructura y funciones de los anticuerpos, así como a la generación de diversidad, activación y maduración de los linfocitos B. Se mencionan las principales técnicas de producción de anticuerpos monoclonales y se enumeran algunas de sus aplicaciones en patología humana.
ConclusionesLos anticuerpos monoclonales han producido desde su descubrimiento una revolución de gran calado en el diagnóstico y el tratamiento de numerosas enfermedades. La utilización de anticuerpos monoclonales humanizados y humanos ha mejorado notablemente su tolerancia. La tecnología actual de fabricación de estos anticuerpos permite nuevos diseños que pueden ampliar sus posibles aplicaciones en medicina.

Abstract

IntroductionMonoclonal antibodies are a powerful tool in laboratory diagnosis and are increasingly used in the treatment of several diseases.
DevelopmentAntibody development and characterization has a long history and goes back to immunology itself. The present article provides a historical introduction to humoral immunity until the discovery of monoclonal antibodies and reviews concepts relating to the structure and function of antibodies, as well as to the generation of diversity, activation and maturation of B lymphocytes. The main techniques for producing monoclonal antibodies are outlined and some of their applications in human disease are described.
ConclusionsSince their discovery, monoclonal antibodies have revolutionized the diagnosis and treatment of numerous diseases. The use of human and humanized monoclonal antibodies has markedly improved their tolerability. Current technology for manufacturing these antibodies allows new designs that may broaden their possible applications in medicine.

Artículo

IntroducciónEl descubrimiento y caracterización de los anticuerpos tiene una larga historia, que es la de la propia inmunología, y se remonta a finales del siglo xix . En esa época, los microbiólogos estudiaban los mecanismos de defensa del organismo contra los agentes microbianos, en particular contra las toxinas bacterianas. Von Behring y Kitasato sentaron en los años noventa del siglo xix las bases de la inmunidad humoral al descubrir que el suero producía sustancias que antagonizaban toxinas como la diftérica o la tetánica. Ehrlich, a finales de siglo, consolidó la idea de que las toxinas generaban antitoxinas séricas que se comportaban según las leyes de la química; las células de la sangre eran capaces de producir unas cadenas laterales que reaccionaban frente a las toxinas de manera específica como una llave con su cerradura1. Por las distintas propiedades de reaccionar las antitoxinas se denominaban de varias maneras: aglutininas, opsoninas, etc.
En los años treinta del siglo xx Landsteiner, el descubridor del sistema ABO, identifica todas esas funciones y las centra en una sola molécula, los anticuerpos, y al tiempo va sustituyéndose el nombre de toxina por el de antígeno. Años más tarde, este mismo autor, junto con Pauling, desarrolla la teoría instruccionista de formación de los anticuerpos, según la cual los antígenos determinarían la conformación de los anticuerpos acomodándola a su estructura. A finales de los cuarenta se descubre el origen celular de los anticuerpos en las células B y plasmáticas. Años más tarde se describen las cadenas ligeras y se identifican las inmunoglobulinas A, D y E.
Frente a la teoría instruccionista, Jerne propuso en los años cincuenta que los anticuerpos preexistían en el organismo y que la función de los antígenos sería la selección de los más adecuados2. Poco después, Burnett y Talmage adelantan la teoría de la selección clonal3 que completa y expande las ideas de Jerne, y que presupone que cada célula B produce un solo tipo de anticuerpo con una especificidad concreta, el cual se genera por mutaciones somáticas al azar durante el proceso de maduración celular; más adelante, la exposición a los antígenos hace que esas células B proliferen.
En los años sesenta se describe el concepto de idiotipo y en los setenta se acuña la teoría de las redes de idiotipos/antiidiotipos, pero la revolución en el mundo de los anticuerpos ocurre en 1975 cuando Milstein y Köhler decubren en Cambridge los anticuerpos monoclonales. En 1976 Tonegawa describe la recombinación somática de los genes de inmunoglobulinas4. Desde entonces la investigación completa el conocimiento de la genética molecular de los anticuerpos y los mecanismos de generación de su diversidad.
Estructura y características básicas de los anticuerposCada molécula de anticuerpo está formada por 4 cadenas, 2 ligeras y 2 pesadas, cada una de ellas idéntica, unidas por puentes disulfuro que forman una estructura espacial similar a una Y. Los anticuerpos tienen 2 funciones fundamentales, de reconocimiento y unión a antígenos, que llevan a cabo mediante los extremos aminoterminales de las cadenas, y una función efectora, realizada por el extremo carboxiterminal de las cadenas pesadas (Figura 1).
Esquema de la estructura de una molécula de inmunoglobulina. Las cadenas pesadas aparecen en negro y las ligeras en gris claro. CH: dominios de la región constante de la cadena pesada; CL: dominio constante de la cadena ligera; COOH: extremo carboxiterminal; Fab y Fc: fragmentos resultantes de proteólisis; NH: extremo aminoterminal; VH: dominio variable de la cadena pesada; VL: dominio variable de la cadena ligera; - - -: puentes disulfuro.
Figura 1. Esquema de la estructura de una molécula de inmunoglobulina. Las cadenas pesadas aparecen en negro y las ligeras en gris claro. CH: dominios de la región constante de la cadena pesada; CL: dominio constante de la cadena ligera; COOH: extremo carboxiterminal; Fab y Fc: fragmentos resultantes de proteólisis; NH: extremo aminoterminal; VH: dominio variable de la cadena pesada; VL: dominio variable de la cadena ligera; - - -: puentes disulfuro.
Las cadenas ligeras tienen una porción variable, de la que depende la especificidad, y una región constante que difiere según se trate de cadenas ligeras κ o λ.
Las cadenas pesadas poseen, asimismo, una región variable y una constante, la cual determinará las clases o isotipos principales de inmunoglobulina (Ig): γ, μ, α. δ y ¿, que formarán, respectivamente, la IgG, IgM, IgA, IgD e IgE. Además, la IgA tiene 2 subclases, IgA1 e IgA2, y la IgG se divide en 4 subclases: IgG1, IgG2, IgG3 e IgG4. Las propiedades de las Ig dependen de cada clase y subclase. Una vez secretadas, las Ig son monoméricas, con excepción de la IgA, que forma dímeros, y de la IgM, pentámeros.
Las regiones variables de las cadenas ligeras y pesadas están yuxtapuestas para formar el sitio de unión al antígeno; por consiguiente, en cada molécula de anticuerpo hay 2 sitios de unión antigénica.
Dentro de la estructura de las cadenas de las Ig se denominan dominios a estructuras repetidas de 110 aminoácidos (AA) con un pliegue beta. Las cadenas ligeras tienen 1 dominio en la región variable (VL) y 1 en la constante (CL). Las cadenas pesadas tienen, a su vez, 1 dominio en la región variable (VH) y 3 o 4 en la región constante (CH) según la clase de Ig. Entre los dominios CH1 y CH2 se encuentra un área denominada bisagra de la cadena constante que le da flexibilidad y permite un acoplamiento espacial adaptable.
En las regiones variables de las cadenas ligeras y pesadas hay 3 segmentos hipervariables de 10 AA yuxtapuestos que forman el sitio de unión al antígeno, que por ser complementarios a su secuencia se denominan CDR 1, 2 y 3, de los cuales el más variable es CDR3. Estas estructuras forman bucles en la superficie de los anticuerpos mediante los que interactúan con los antígenos. El resto del dominio variable se llama FR.
La proteólisis de las moléculas de Ig da lugar a distintos fragmentos según la sustancia empleada; el fragmento F(Ab’)2 se genera tras tratamiento con pepsina que corta la molécula a la altura de la bisagra dejando la parte superior de la Y con 2 fragmentos F(Ab) unidos entre sí. La papaína digiere la molécula más arriba y deja 3 fragmentos, 2 F(Ab) y un fragmento constante, Fc. Se habla de fragmento F(Ab’) cuando incluye la región de la bisagra de la cadena pesada.
Los anticuerpos son capaces de generar numerosas respuestas tras su unión a los antígenos. Esas respuestas efectoras dependen del extremo carboxiterminal de cada isotipo que determina el tipo de unión a determinados receptores de membrana de las células y la capacidad de fijar complemento.
Síntesis de inmunoglobulinas. Generación de diversidad. Activación y maduración de los linfocitos BLa producción de las Ig corre a cargo de las células B que en su etapa madura expresan en la membrana moléculas de IgM e IgD. Cuando se activan, comienza una producción de Ig de baja tasa, cambia el isotipo y comienza la maduración por afinidad. En la etapa de célula plasmática hay una alta secreción de Ig de alta afinidad con escasa presencia de Ig de membrana.
Los mecanismos que controlan la diversidad de los anticuerpos5 son altamente complejos y han ocupado la actividad de los investigadores durante décadas. Resumiendo mucho, podemos decir que existen 2 etapas básicas en este proceso: una recombinación somática, en la que se produce la combinación de distintos segmentos génicos presentes en las regiones variables de las cadenas ligeras y pesadas que terminan formando un gen funcional responsable de la secuencia de AA de la porción variable de la molécula de Ig, que da lugar a una muy elevada diversidad de moléculas en lo que se llama repertorio primario de anticuerpos, y una hipermutación somática durante la respuesta a antígenos, que corresponde a mutaciones puntuales de la secuencia variable una vez formada ésta y que terminan permitiendo una mayor afinidad de unión. Además, a medida que madura la respuesta inmune tiene lugar un cambio de isotipo mediante el cual el segmento variable reordenado puede combinarse con cualquiera de los segmentos constantes de las Ig y de ello dependerán las características efectoras finales de la molécula de Ig secretada.
Los genes de las cadenas ligeras se agrupan en 2 segmentos génicos de la región variable, V (variable) y J (unión) y un segmento constante (C) distinto según se trate de cadenas κ o λ. Las cadenas pesadas tienen 3 segmentos en las regiones variables: V, D (diversidad) y J, y un segmento C distinto según el isotipo de cada Ig.
En los seres humanos la cadena ligera κ depende de una región en el cromosoma 2 que agrupa los segmentos V, J y C. Los mismos segmentos génicos responsables de la cadena λ están en el cromosoma 22. Los segmentos V, D, J y C de las cadenas pesadas se sitúan en un área del cromosoma 14. El número de segmentos V, D, J y C de las cadenas y la probabilidad de combinación se detallan en la Tabla 1.
Tabla 1. Combinaciones posibles en el repertorio primario de anticuerpos
 Cadenas κCadenas λCadenas pesadas
Segmentos V403151
Segmentos D0027
Segmentos J546
Posibilidades de combinación2001248.262
Posibilidades de combinación total: (200+124) x 8.262=2.676.888.
Tomado de Álvarez-Vallina et al, 2004.
Para que las células B se activen se necesita el contacto con los antígenos. Es importante resaltar que a diferencia de lo que ocurre con las células T, las células B reconocen una amplia variedad de antígenos proteicos y no proteicos. Las macromoléculas estimulan a los anticuerpos mediante determinantes antigénicos o epítopos que pueden ser lineales o conformacionales, esto es, yuxtapuestos en un pliegue de la proteína. Si la proteína se transforma puede originar nuevos determinantes antigénicos. La unión con el antígeno es reversible y la fuerza de su unión se llama afinidad. La fuerza global de unión al antígeno se conoce como avidez, que depende del número de puntos de unión disponibles. La especificidad es la capacidad de reconocer en un anticuerpo pequeñas diferencias antigénicas.
Las moléculas de IgM e IgD ancladas en la membrana de las células B actúan como receptores de antígeno. En el caso de los antígenos proteicos, se requiere la ayuda de las células T para activar a las B, lo cual implica el desencadenamiento de señales intracelulares con activación de factores de transcripción y expresión de genes, cambio de isotipo y diferenciación hacia célula productora de anticuerpos. En el caso de los antígenos no proteicos, no dependientes del timo, no se requiere la cooperación de las células T. La activación cesa a través de señales inhibitorias complejas cuando la cantidad de anticuerpo producida es suficiente.
Durante la activación y maduración las células B migran a los folículos de ganglios linfáticos y del bazo, donde maduran mediante hipermutación somática con aumento creciente de afinidad por el antígeno. Al final sobreviven solamente las más afines al antígeno presentado por células dendríticas y, finalmente, migran hacia órganos linfáticos secundarios, aunque una pequeña parte permanece como células B de memoria que recirculan entre ganglios linfáticos y del bazo. Cada clon de células plasmáticas produce un solo tipo de anticuerpo.
Producción de anticuerpos monoclonalesLos anticuerpos monoclonales se descubrieron en la primera mitad de los años setenta por Milstein y Köhler en el laboratorio de biología molecular de Cambridge (Reino Unido). Estos autores investigaban los mecanismos moleculares de la generación de diversidad de los anticuerpos y necesitaban producir una célula B inmortal con especificidad conocida, para así poder analizar en detalle las mutaciones de los genes de las Ig. Para ello fusionaron una línea de células de mieloma murino, sensible a ciertos fármacos, con células de bazo de un animal inmunizado. Mediante este procedimiento consiguieron seleccionar solamente las células híbridas y los clones con especificidad conocida. Su trabajo fue publicado en Nature en 19756 y 9 años más tarde recibieron el premio Nobel por este descubrimiento. Su trascendencia fue enorme, ya que por primera vez era posible disponer de cantidades ilimitadas de anticuerpos con especificidades precisas.
Las células tumorales de mieloma de ratón procedían todas ellas de una línea creada por Michael Potter en los años sesenta denominada MOPC21, deficitarias en enzimas clave para la síntesis de oligonucleótidos por la vía de rescate. El agente fusionante inicial era el virus Sendai, pero pronto se sustituyó por polietilenglicol. Las células B provenían de ganglios linfáticos o del bazo de ratones inmunizados repetida y eficazmente con el antígeno deseado. Estas células se cultivaban con las de mieloma y el agente fusionante en un medio de cultivo de composición especial (HAT) que no permite la supervivencia de las de mieloma no hibridadas; los linfocitos B no fusionados morían también y quedaban las células fusionadas. La especificidad se analizaba en los sobrenadantes de los pocillos de las placas de cultivo, seleccionando sólo los deseados y al final se llevaba a cabo la clonación por dilución límite u otros medios7, 8.
Los hibridomas creados pueden conservarse indefinidamente en dimetil sulfóxido y los anticuerpos monoclonales se purifican a partir de los sobrenadantes. El rendimiento en cultivo no es muy alto y por ello se ha desarrollado la técnica de producción de ascitis en ratones mediante la inyección intraperitoneal de los hibridomas, método no aceptado en todos los países, o procedimientos in vitro mediante la fermentación de cultivos de células de mamífero utilizando biorreactores y sistemas de cultivo de perfusión continua.
El primer uso en terapia humana fue en 1982 para el tratamiento de un linfoma9. Pronto se vio que el uso de monoclonales murinos arrastraba el problema de la tolerancia con producción de anticuerpos humanos antimurinos que disminuían su eficacia. Para solventar estas dificultades se exploraron diversas alternativas, de las que las más importantes son la quimerización y la humanización. La quimerización se desarrolló en 198410. Por quimerización se entiende la producción de anticuerpos monoclonales en los que solamente la región variable es de origen murino, y el resto de las cadenas pesadas y ligeras es de origen humano. En los anticuerpos humanizados sólo son murinas las regiones hipervariables de las cadenas ligeras y pesadas11, 12. La mitad de los monoclonales utilizados en terapia humana son quiméricos o humanizados (Figura 2).
Quimerización y humanización de anticuerpos monoclonalesA) Monoclonal murino. B) Monoclonal quimérico, en el que las regiones variables son de origen murino siendo humano el resto de las cadenas.C) Monoclonal humanizado: sólo incluye los segmentos hipervariables de origen murino. D) Monoclonal humano.
Figura 2. Quimerización y humanización de anticuerpos monoclonalesA) Monoclonal murino. B) Monoclonal quimérico, en el que las regiones variables son de origen murino siendo humano el resto de las cadenas.C) Monoclonal humanizado: sólo incluye los segmentos hipervariables de origen murino. D) Monoclonal humano.
Otra alternativa son los monoclonales humanos que se producen en animales transgénicos portadores de genes de Ig humanas; los transgenes incluyen fragmentos de las regiones variables en línea germinal, lo que les facilita la capacidad recombinatoria de los anticuerpos humanos. Las vías de introducción de esos segmentos son los miniloci, los cromosomas artificiales de levadura o humanos, y los vectores P1. Los animales pueden tener inactivados los genes de sus Ig endógenas13, 14. Los monoclonales humanos son más ventajosos por su menor antigenicidad y mejor tolerancia, y por su mayor tiempo en circulación en relación con los quiméricos.
La tecnología de fragmentos de bibliotecas de anticuerpo desplegados en proteínas de la superficie de fagos filamentosos, introducida en la última década del pasado siglo, es otra posibilidad de producir grandes repertorios de genes de las regiones variables de las Ig humanas15.
Es importante señalar que la tecnología recombinante disponible permite además la fabricación de varios tipos de fragmentos derivados de anticuerpos, entre ellos los F(ab’)2 sin región Fc, los fragmentos Fab, los bivalentes o diabodies, o incluso trímeros o tetrámeros llamados triabodies y tetrabodies. Estos fragmentos permiten solventar algunos de los problemas relacionados con la molécula completa del anticuerpo, mejorar la avidez y facilitar la unión a determinadas dianas.
Utilidad y aplicación en patología humana de los anticuerpos monoclonalesIndependientemente de su uso en técnicas de diagnóstico, que han supuesto una revolución en el campo de la histopatología o permitido el desarrollo de técnicas de laboratorio como la citometría de flujo, las posibilidades de aplicación para tratar enfermedades humanas son amplísimas16. Dependiendo de la región Fc, la unión del anticuerpo monoclonal al antígeno contra el que está diseñado puede facilitar la producción de citotoxicidad celular dependiente de anticuerpos (ADCC) o citotoxicidad por la activación del sistema de complemento. La propia unión al antígeno puede bloquear receptores de la membrana celular, unirse a factores presentes en el suero y evitar su unión a receptores, o inducir señales intracelulares. Las consecuencias finales de estas interacciones son numerosas y han encontrado aplicación en áreas muy diversas.
Una manera de modificar la capacidad efectora de los anticuerpos monoclonales es la conjugación con moléculas citotóxicas con toxinas, con radiofármacos o con citocinas; esta última ha sido una estrategia utilizada en oncología mediante la creación de proteínas de fusión que incorporaban genes de IL-2, IL-12 o GM-CSF, entre otras. La conjugación de enzimas capaces de convertir un profármaco en fármaco con anticuerpos monoclonales dirigidos a células tumorales ha permitido una acción muy selectiva en el tejido tumoral del fármaco en cuestión.
La oncología es, sin duda, el área de aplicación terapéutica más importante. Son de amplia utilización los anticuerpos dirigidos contra HER2 en cáncer de mama, o contra el factor de crecimiento epidérmico (EGF) o el factor de crecimiento del endotelio vascular (VEGF) en varios tipos de tumores, o los anti CD20 o anti CD52 para linfomas/leucemias.
Las enfermedades autoinmunes son el grupo siguiente de patología humana en el que más se han empleado estos productos y, fundamentalmente, en artritis reumatoide, enfermedad inflamatoria intestinal, esclerosis múltiple, lupus eritematoso, así como en el rechazo de trasplantes y enfermedad de injerto contra el huésped. Los más utilizados han sido anticuerpos contra citocinas, sobre todo TNF-α y anti VLA4, pero también anti CD20 y anti CD25, entre otros.
Los anticuerpos monoclonales se han empleado también con otras finalidades, como el tratamiento de la septicemia, la prevención de complicaciones de enfermedades virales o el tratamiento de intoxicaciones por fármacos. No es el propósito de este artículo una revisión detallada de las aplicaciones actuales de los anticuerpos monoclonales actualmente aprobados y de muchos más en distintas etapas de desarrollo terapéutico. Sin ninguna duda, la disponibilidad de estos anticuerpos y de la tecnología para su refinamiento constituye ahora y más aún en el futuro una parte fundamental de nuestra terapéutica.
ConclusionesMás allá del impacto en el diagnóstico de laboratorio, los anticuerpos monoclonales son una herramienta terapéutica poderosísima. Su alta especificidad permite el abordaje de dianas muy precisas que pueden determinar cambios celulares muy variados; además, dependiendo de la región Fc pueden diseñarse para facilitar distintos tipos de respuestas efectoras. El empleo de anticuerpos humanizados y humanos ha mejorado notablemente su tolerancia clínica. La manipulación de los anticuerpos mediante la unión a otras moléculas o el diseño de nuevas fragmentos de anticuerpos abren un gran abanico de posibles aplicaciones en medicina.

La terapia dirigida es el resultado de aproximadamente 100 años de investigación dedicada a comprender las diferencias entre las células cancerosas y las células normales. En la actualidad, el tratamiento del cáncer se ha centrado principalmente en destruir las células que se dividen rápidamente, al ser ésta una característica de las células cancerosas. Desafortunadamente, algunas de nuestras células normales también se dividen rápidamente; por lo que se producen múltiples efectos secundarios. 
La terapia dirigida se basa en la identificación de otras características de las células cancerosas. Los científicos buscan diferencias específicas entre las células cancerosas y las células normales. Esta información se utiliza para crear una terapia dirigida que ataque las células cancerosas sin dañar las células normales, de manera que se produzcan menos efectos secundarios. Cada tipo de terapia dirigida funciona de manera un tanto diferente, pero todas interfieren con la capacidad de las células cancerosas para crecer, dividirse, repararse y/o comunicarse con otras células. Los tipos modernos de terapia dirigida incluyen el uso de anticuerpos monoclonales y fármacos antiangiogénicos, los cuales se describen aquí con más detenimiento.
Los diferentes tipos de terapias dirigidas se definen en tres amplias categorías. Algunas terapias dirigidas se centran en los componentes internos y el funcionamiento de la célula cancerosa. Las terapias dirigidas utilizan pequeñas moléculas que pueden introducirse en la célula e afectar su funcionamiento, provocando su muerte. Hay varios tipos de terapias dirigidas que se centran en la partes internas de las células. Otras terapias dirigidas están destinadas a los receptores que se encuentran en el exterior de la célula. Las terapias dirigidas a los receptores también se conocen como anticuerpos monoclonales. Los fármacos antiangiogénicos se centran en los vasos sanguíneos que suministran oxígeno a las células, provocando finalmente que las células carezcan de nutrición.
Los investigadores están de acuerdo en que las terapias dirigidas no reemplazan a las terapias tradicionales. Las terapias dirigidas que incluyen la producción de componentes, como los anticuerpos monoclonales o los fármacos antiangiogénicos, son las que mejor pueden aprovecharse en el corto plazo, combinadas con terapias tradicionales. Se requiere más investigación para identificar qué tipos de cáncer pueden tratarse mejor con terapias dirigidas, como los anticuerpos monoclonales o los fármacos antiangiogénicos, y para identificar objetivos adicionales para más tipos de cáncer.
Terapias dirigidas contra el cáncer
  • Inhibidores de la señal de transducción: mesilato de imatinib (inhibidor de la proteína tirosina quinasa), gefitinib (inhibidor de la tirosina quinasa del receptor del factor de crecimiento epidérmico, EGFR-TK), cetuximab (receptor del factor de crecimiento epidérmico) 
  • Agente modificador de la respuesta biológica: denileukin diftitox
  • Inhibidor de la proteasoma: bortezomib

Utilización de anticuerpos monoclonales como terapia dirigida

Los anticuerpos monoclonales son un tipo relativamente nuevo de terapia "dirigida" para el cáncer. Los anticuerpos son parte del sistema inmunitario. Normalmente, el cuerpo crea anticuerpos en respuesta a un antígeno (como, por ejemplo, una proteína en un microbio) que ingresa en el cuerpo. Los anticuerpos se unen al antígeno para marcarlo con el fin de que el sistema inmunitario del cuerpo lo destruya. En el laboratorio, los científicos analizan antígenos específicos de la superficie de células cancerosas (diana) para determinar una proteína que corresponda al antígeno. Luego, utilizando proteínas de animales y humanos, los científicos trabajan para crear un anticuerpo especial que se adhiera al antígeno diana. Un anticuerpo se adherirá al antígeno que le corresponda de la misma manera que una llave encaja en su cerradura. Esta tecnología permite dirigir el tratamiento hacia células específicas, causando una menor toxicidad para las células sanas. La terapia con anticuerpos monoclonales puede usarse sólo en tipos de cáncer cuyos antígenos (y sus respectivos anticuerpos) hayan sido identificados. Los siguientes son anticuerpos monoclonales:
  • Alemtuzumab
  • Gemtuzumab ozogamicina
  • Rituximab
  • Trastuzumab
  • Ibritumomab tiuxetan
Antiangiogénesis (inhibidores de la angiogénesis)
La antiangiogénesis consiste en interrumpir la formación de nuevos vasos sanguíneos. Un poco de información general sobre la angiogénesis ayudará a comprender su funcionamiento.
En el tejido normal, se forman nuevos vasos sanguíneos durante el crecimiento y la reparación tisular (es decir, la cicatrización de una herida), así como durante el desarrollo de un bebé durante el embarazo. Los vasos sanguíneos transportan al tejido el oxígeno y los nutrientes necesarios para el crecimiento y la supervivencia. En el cáncer, los tumores necesitan los vasos sanguíneos para poder crecer y propagarse. Por medio de un proceso complejo, las células endoteliales (que recubren los vasos sanguíneos) pueden dividirse y crecer, y crear nuevos vasos sanguíneos. Este proceso se llama angiogénesis y tiene lugar tanto en el tejido sano como en el canceroso.
Existen sustancias conocidas que estimulan la angiogénesis, o que la detienen o inhiben. Desde 1971, Judah Folkman, un cirujano de Massachussets, ha estado investigando estas sustancias. Su teoría es que si se pudiera detener el desarrollo de nuevos vasos sanguíneos, un tumor no podría crecer ni propagarse. El cáncer finalmente moriría por falta de nutrición. Desde entonces, los científicos se han dedicado a estudiar la producción de sustancias naturales y sintéticas (hechas por el hombre) llamadas agentes antiangiogénicos o inhibidores de la angiogénesis. En estudios en animales, estos inhibidores de la angiogénesis han detenido con éxito la formación de nuevos vasos sanguíneos, haciendo que el cáncer encogiera y muriera.
Es demasiado pronto para saber si estos inhibidores de la angiogénesis serán efectivos en la terapia anticancerosa en humanos. En la actualidad, hay más de 20 compuestos que están siendo probados en ensayos clínicos para una variedad de cánceres. Algunos de estos inhibidores de la angiogénesis están comercialmente disponibles, ya que fueron aprobados por la Administración de Fármacos y Alimentos de los Estados Unidos (FDA, por sus siglas en inglés) para otros usos. Se cree que fármacos como el interferón alfa y la talidomida tienen la capacidad de inhibir la angiogénesis y están siendo estudiados en tipos específicos de cáncer. Otros fármacos antiangiogénicos son nuevos, no han sido aprobados por la FDA y sólo se los puede administrar en situaciones de ensayo clínico; principalmente en casos de enfermedad avanzada. Los investigadores están trabajando para conocer la seguridad y eficacia de estos medicamentos.
Se espera que los inhibidores de la angiogénesis tengan menor toxicidad, ya que afectarían únicamente el desarrollo de nuevos vasos sanguíneos. Sin embargo, debido a que estos medicamentos se administran sistémicamente (son absorbidos por todo el cuerpo), es probable que tengan efectos secundarios inesperados. Además, es muy pronto para saber si la antiangiogénesis dañará los vasos sanguíneos sanos que puedan ser necesarios en otras partes del cuerpo. Los beneficios y riesgos de los fármacos antiangiogénicos se determinarán por medio de ensayos clínicos que se lleven a cabo en los próximos años.
El uso (y perfeccionamiento) de los sistemas y procesos naturales del cuerpo para ayudar en el tratamiento del cáncer está íntimamente relacionado con el tema de la inmunoterapia y el sistema inmunitario en general.

anatomía humana

Sistema inmunitario

Los anticuerpos (también conocidos como inmunoglobulinas, abreviado Ig) son glicoproteínas del tipo gamma globulina. Pueden encontrarse de forma soluble en la sangre u otros fluidos corporales de los vertebrados, disponiendo de una forma idéntica que actúa como receptor de los linfocitos B y son empleados por el sistema inmunitario para identificar y neutralizar elementos extraños tales como bacterias, virus o parásitos.- ....................................................:https://es.wikipedia.org/w/index.php?title=Especial:Libro&bookcmd=download&collection_id=a87071a8b813edf57fa15fa58b4fe8bd77a079f9&writer=rdf2latex&return_to=Anticuerpo

2fab fc.png

Abb1 ImmGlob.jpg

Ac-toxine2.png  Ac-toxine1.png

Adalimumab structure.png
Antibodies 01.svg

Antibodies in cancer therapy 01.svg

Antibody chains.svg

Antibody structure.svg

Antibody svg.svg

Antibody-drug-conjugate 01.png